学院刘海平教授团队博士后揭示泥鳅未减数精子形成机制并提出“配子倍性工程”育种新策略
近日,学院刘海平教授团队博士后张运邦在国际权威学术期刊《美国国家科学院院刊》(PNAS)发表了题为“Cdk1 heterozygosity triggers premeiotic endoreplication and unreduced sperm formation via the Cdk2/Ccne1–Fzr1a pathway in loach, a teleost”的研究论文。该研究以二倍体泥鳅为研究对象,揭示了cdk1杂合突变通过Cdk2/Ccne1–Fzr1a通路诱导精原细胞减数分裂前核内复制并形成未减数二倍体精子的分子机制,在基因功能解析与鱼类多倍体种质创制之间建立了直接联系,为水产动物配子倍性调控和多倍体育种提供了新的遗传学路径。
多倍化既是脊椎动物基因组演化的重要动力,也是水产动物种质创新的重要手段。未减数配子能够保留与亲本体细胞相同的染色体组,是自然多倍体形成和人工多倍体育种的重要生物学基础。部分脊椎动物可通过减数分裂前核内复制,使生殖细胞在进入减数分裂前完成额外一轮DNA复制,进而产生未减数配子。然而,生殖细胞如何突破正常倍性限制、启动减数分裂前核内复制,以及这一过程受到哪些分子通路调控,长期以来仍缺乏清晰解释。与此同时,现有鱼类人工多倍体诱导主要依赖温度、压力或化学处理,其诱导效果容易受到处理时机、剂量和亲本状态等因素影响,因此,探索可遗传、可调控的配子倍性形成途径具有重要科学意义和育种价值。
研究团队发现,雄性cdk1杂合突变泥鳅能够产生未减数二倍体精子。野生型雌鱼与突变雄鱼杂交后,获得的后代中三倍体比例达到5.10%—7.98%。通过BrdU掺入、磷酸化组蛋白H3免疫检测、DNA含量分析和染色体观察,研究团队证实部分突变体精原细胞在正常有丝分裂和胞质分裂完成前再次启动DNA复制,形成染色体组加倍的精原细胞。这些细胞随后以四倍体状态进入减数分裂,并在粗线期形成50个二价体。这些发现表明,cdk1杂合突变泥鳅产生未减数二倍体精子的主要原因是精原细胞发生了减数分裂前核内复制。
为解析驱动这一过程的分子机制,研究团队综合运用定量蛋白质组学、磷酸化蛋白质组学、免疫沉淀及体内功能干预等技术开展验证。结果证实,cdk1杂合突变提高了Cdk2第15位酪氨酸的抑制性磷酸化水平,并促进Ccne1积累以及Cdk2/Ccne1复合物形成。该复合物进一步增强Fzr1a第124位苏氨酸的磷酸化,抑制APC/CFzr1a复合物活性,进而扰乱有丝分裂退出、胞质分裂和下一轮DNA复制之间的有序切换,最终推动精原细胞发生减数分裂前核内复制。对Cdk2进行功能干预后,突变雄鱼的未减数二倍体精子及相应三倍体后代不再检出,进一步证明Cdk2/Ccne1–Fzr1a通路是该表型形成的关键调控环节(图1)。
在机制解析的基础上,研究团队利用cdk1突变泥鳅产生的未减数二倍体精子,进一步获得了三倍体和四倍体泥鳅后代,验证了通过遗传调控配子倍性进而创制鱼类多倍体种质的可行性。团队据此提出“配子倍性工程”(Gamete Ploidy Engineering,GPE)育种策略,即通过遗传调控生殖细胞周期,获得特定倍性的功能性配子并用于多倍体种质创制(图1)。该研究将细胞周期调控、未减数配子形成与多倍体育种有机衔接,不仅为理解脊椎动物减数分裂前倍性稳态和多倍化演化提供了新的分子机制,也为水产动物染色体组定向调控和多倍体种质创制提供了潜在靶点与技术思路。
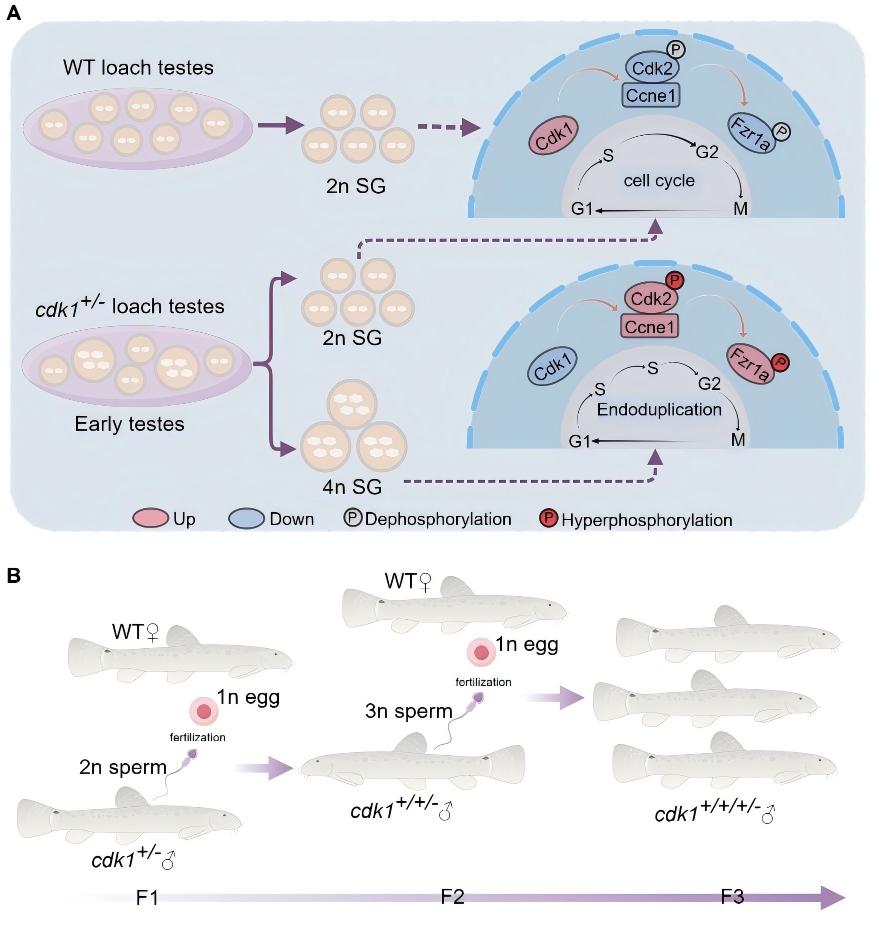
图1研究机制模型及“配子倍性工程”育种策略示意图
该研究由西南大学水产学院刘海平教授团队和华中农业大学水产学院曹小娟教授团队共同指导完成。西南大学水产学院职前博士后张运邦、博士研究生李荣云,华中农业大学水产学院博士生梅熠辉、博士后孙兵为论文共同第一作者。该研究得到了国家自然科学基金和中央高校基本科研业务费专项资金等项目资助。
文章链接:https://doi.org/10.1073/pnas.2613873123
供稿:张运邦
供图:张运邦
复审:陈博
终审:刘一丹
